Regulación de acceso a La Pedriza: Invierno
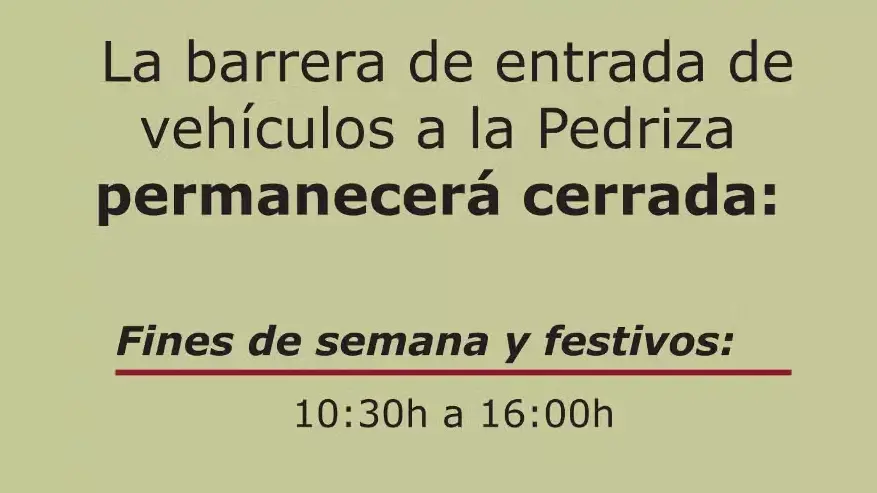
A partir del 1 de octubre, entra en vigor el horario de invierno para acceder con vehículo particular al paraje de La Camorza.
Ver +

Nuria Sanz es profesora del Departamento de Biología de la Universitat de Girona e investigadora del Grup de Recerça Laboratori d'Ictiologia Genètica. Es experta en genética de poblaciones y conservación evolutiva de peces continentales. Sus investigaciones se centran en la identificación de cambios evolutivos entre poblaciones de especies amenazadas y explotadas, y en la estimación de recursos genéticos valiosos para la gestión sostenible y la conservación. Ha trabajado principalmente con la trucha común y otras especies de interés comercial como la anchoa y el atún rojo, y con especies invasoras como la gambusia, el mejillón cebra y la almeja asiática.
En las poblaciones de peces, el uso de herramientas moleculares ha permitido identificar especies, descubrir patrones de estructura poblacional y procesos de fragmentación ocultos a simple vista, o evaluar la diversidad genética, importantísima para determinar hasta qué punto la población puede adaptarse a los cambios ambientales y sobrevivir a largo plazo. En el caso de la trucha, la genética ha sido clave para descubrir procesos de introgresión de genomas exógenos en los genomas nativos, como consecuencias de unas mal-llamada repoblaciones realizadas con ejemplares de piscifactoría, que genéticamente eran completamente distintos a las truchas nativas. También la genética nos ha permitido evaluar la consanguinidad y realizar estudios de parentesco para conocer el comportamiento demográfico de la población o la estructura familiar de un stock, o sexar ejemplares inmaduros que no pueden ser sexados por morfología. Los trabajos en trucha común han ido evolucionando conforme han ido apareciendo nuevas técnicas de análisis molecular. Los primeros trabajos con alozimas, descubrieron que la trucha es una especie (o varias) que contiene una enorme diversidad genética tanto entre como dentro de las poblaciones. Más adelante, estos marcadores fueron substituidos por metodologías basadas en el estudio del ADN. Entre ellas, la metodología basada en el corte con enzimas de restricción permitió también estudios poblacionales, aunque hoy en día ha quedado relegada a su uso como diagnóstico para identificar la introgresión. La secuenciación de genes, sobre todo del ADN mitocondrial, dio lugar a la técnica del DNA barcoding para identificar especies, y permitió describir los principales linajes de trucha en Europa e incluso identificar nuevas especies. Posteriormente, y debido a su elevado polimorfismo, los microsatélites se convirtieron en los marcadores por excelencia para el estudio de poblaciones, permitiendo incluso describir la estructura familiar de la población. Y ya en la actualidad, el genotipaje masivo de SNPs nos permite una información mucho más representativa del genoma, destacando su capacidad para descubrir regiones con importancia adaptativa en los genomas de las poblaciones.
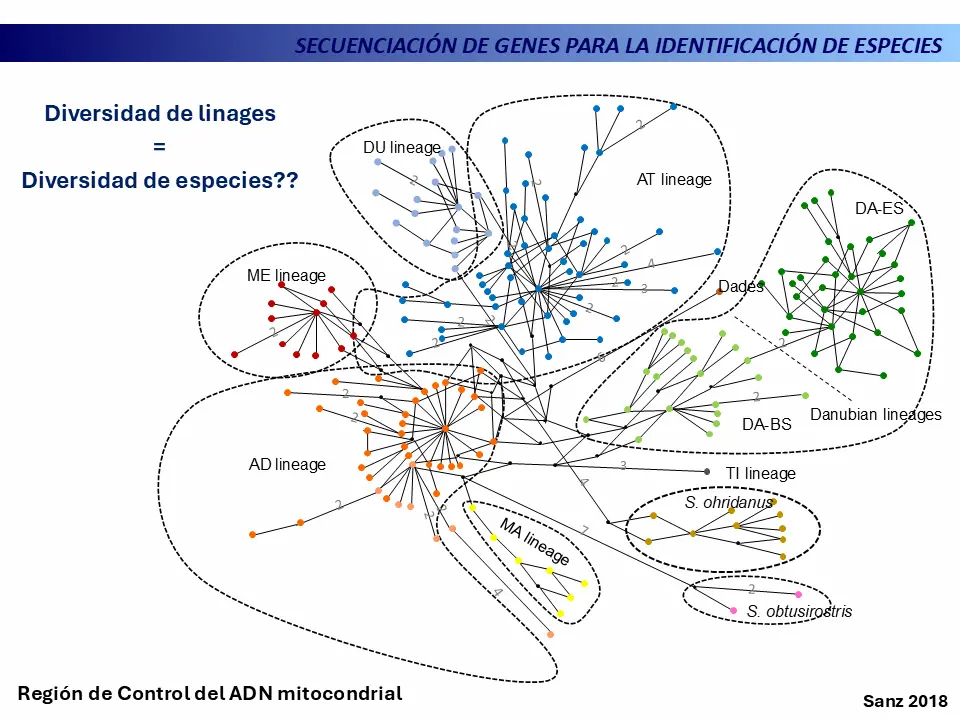
La compleja diversidad genética revelada por todos estos marcadores moleculares en la trucha común, ha ido acompañada de una taxonomía confusa que ha llevado a una continua reclasificación y definición de especies a lo largo de los años. En la actualidad, el catálogo FishBase reconoce hasta 45 especies de trucha dentro del género Salmo. Sin embargo, la existencia de la mayoría de las especies descritas no ha sido apoyada por datos genéticos. Los trabajos genéticos sobre taxonomía se han basado sobre todo en la secuenciación de genes mitocondriales. La revisión geográfica más extensiva que abarcó toda la distribución nativa de la trucha común confirmó las posiciones taxonómicas de Salmo ohridanus y S. obtusirostris como dos especies ancestrales claramente distintas, y un complejo de especies de trucha común que comprende varios linajes mayores y menores y que incluiría la gran mayoría del resto de especies previamente identificadas. Para muchas de las especies descritas no existe desde el punto de vista genético un ancestro común que soporte su identificación como especie. Lo vemos por ejemplo en el caso de Salmo cettii, que se encuentra en Córcega, Cerdeña, Sicilia y gran parte de la costa Tirrénica de Italia, y que se describe como una especie distinta. Sin embargo, genéticamente, esta especie engloba tanto linajes mediterráneos y adriáticos en Córcega y Cerdeña, como atlánticos, en Sicilia. E incluso, si llegáramos a considerar como Salmo cettii únicamente las truchas de Sicilia, tampoco tendríamos una identidad genética robusta, ya que los haplotipos atlánticos de las truchas sicilianas comparten grandes similitudes con las truchas del norte de África y de los ríos atlánticos de la península Ibérica. La genética nos permite aclarar la taxonomía, pero decidir hasta qué punto tenemos o no una especie distinta es una cuestión mucho más compleja que debe tener en cuenta muchos más aspectos a parte de la genética, y es cierto que la categorización de especie puede contribuir a la conservación de las poblaciones.
A nivel macrogeográfico, encontramos que la diversidad genética de la trucha en la Península se distribuye siguiendo un patrón hidrográfico, que es mucho más evidente en los ríos Atlánticos. En la vertiente mediterránea, la distribución de la diversidad genética se ajusta más a un patrón en mosaico, en el que observamos poblaciones que ‘genéticamente’ se desmarcan y se parecen más a localidades que no son de su propia cuenca. Esto da lugar a endemismos dentro de la propia cuenca, es decir, poblaciones genéticamente únicas, o claramente distintas que son así debido a una historia evolutiva compleja y muy antigua. A escala microgeográfica, la variabilidad genética sigue distribuyéndose acorde a la estructura jerárquica de la red hidrográfica, y los ríos y sus afluentes suelen presentar una clara identidad genética. Pero ¿qué ocurre dentro de un río? Aunque a simple vista observemos los ríos como un continuo de ejemplares que se mezclan entre ellos, existen también patrones de estructura poblacional que dividen los ejemplares en poblaciones más o menos conectadas. De manera simple, en un río sin barreras, las poblaciones suelen estructurarse siguiendo un modelo de aislamiento por distancia. Sin embargo, en presencia de barreras (cascadas, presas, azudes..) se produce una fragmentación, que a menudo afecta más a las poblaciones de la parte alta del río, que quedan asiladas. El aislamiento de las cabeceras puede tener consecuencias adversas para el reclutamiento en las poblaciones de trucha, ya que en muchos casos este reclutamiento depende de la migración de los ejemplares que van a reproducirse aguas arriba en aguas más limpias y protegidas de depredadores. En este sentido, son muchos los trabajos que relacionan el declive de las poblaciones con la ausencia de acceso de los peces hacia áreas de alimentación o áreas protegidas y libres de contaminación para reproducirse. El aislamiento provoca también la pérdida de diversidad genética y compromete la capacidad de adaptación de la trucha y su supervivencia a largo plazo. Esta diversidad, está directamente relacionada con lo que en genética llamamos el tamaño efectivo, un parámetro teórico que representa el número de ejemplares que realmente contribuyen a mantener la diversidad genética a lo largo de las generaciones. Evidentemente, en una situación favorable, las poblaciones deben tener una diversidad genética elevada y un tamaño efectivo elevado. En poblaciones mermadas, asiladas o bajo condiciones ambientales adversas, vamos a encontrar valores bajos de diversidad y de tamaño efectivo. El tamaño efectivo también depende mucho de la estructura demográfica de la población. En poblaciones con una elevada varianza en el número de descendientes por familia, la diversidad genética y el tamaño efectivo van a ser menores.
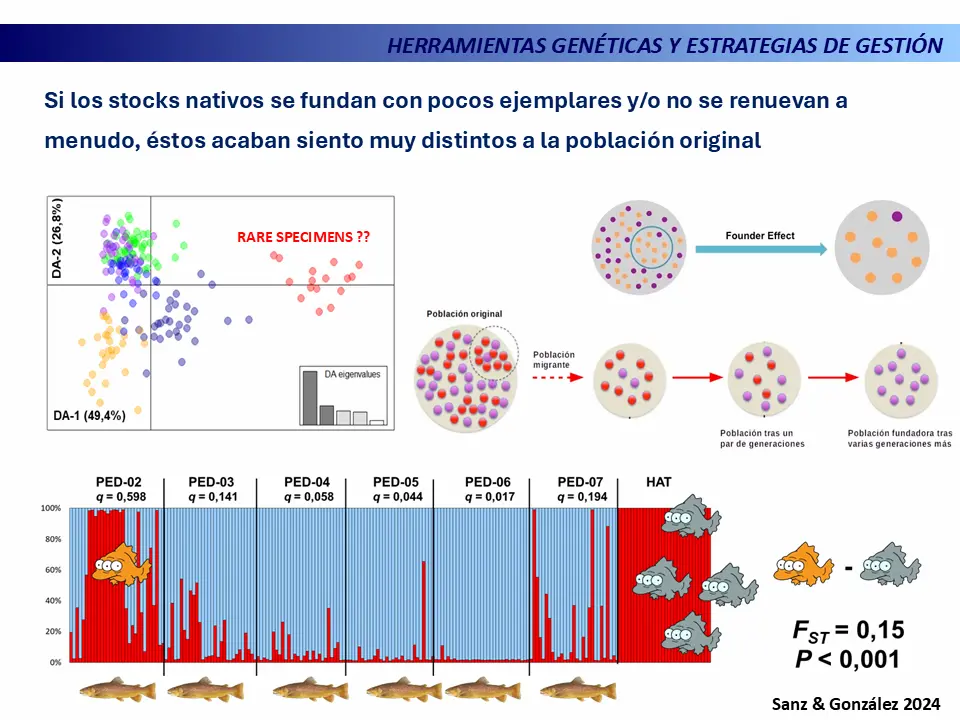
Durante muchísimos años, la principal estrategia de gestión de la trucha se ha basado en la repoblación con ejemplares procedentes del norte de Europa, completamente distintos a los ejemplares nativos de nuestros ríos. El locus de la LDHC, estudiado inicialmente con alozimas y posterior y actualmente mediante enzimas de restricción, es un marcador diagnóstico que permite identificar ejemplares de repoblación, autóctonos e híbridos, y detectar así la introgresión de genoma exógeno en las poblaciones. Ejemplos de introgresión hay desafortunadamente muchísimos, por ejemplo, en los ríos del Parque Nacional d’Aigüestortes, se detectó una introgresión importante en la zona protegida, prohibida para la pesca, pero repoblada, aunque se puso también de manifiesto que, a pesar de las intensas repoblaciones de los años 70-80, existen todavía algunas poblaciones puras o casi puras tanto en los ríos del Parque como en la periferia. La repoblación con ejemplares exógenos está prohibida desde 2007, pero algunos trabajos, como el realizado en la cuenca del Esva, han revelado repoblaciones ilegales, al detectarse ejemplares de repoblación exógenos únicamente el segundo año de muestreo en dos capturas realizadas en años consecutivos (2010-2011). La introducción de genes exógenos en las poblaciones nativas lleva como consecuencia un aumento de la diversidad genética de las poblaciones, dándonos una falsa idea de que la especie gana diversidad, cuando en realidad no es así, ya que, al repoblar todos los ríos con los mismos stocks, disminuye el componente de diversidad entre poblaciones, produciéndose una homogeneización dentro de la especie y una pérdida de patrimonios genéticos únicos. Por otra parte, debido a que los ejemplares procedentes de los stocks de repoblación suelen proceder de unos pocos reproductores, las repoblaciones pueden también comportar un aumento de la consanguinidad, tal y como se ha reportado en algunos casos. Ésto puede producirse incluso si repoblamos con stocks nativos, que, si no se manejan adecuadamente, pueden tener también consecuencias que comprometan el futuro de la población salvaje. En el río Pedroso, identificamos claramente una subestructura dentro de una población, que presentaba un grupo de ejemplares altamente consanguíneos y completamente distintos a los que encontramos en el resto del río. Después de comprobar que no se trataba de una repoblación ilegal con ejemplares exógenos, averiguamos que, unos meses anteriores al muestreo, se produjo una suelta de alevines desde una piscifactoría que mantiene un stock local supuestamente originado con truchas del mismo Pedroso. Esto puede explicarse fácilmente a la luz de la genética de poblaciones, y es lo que se conoce como un efecto fundador: un stock fundado con pocos ejemplares acaba siendo consanguíneo y distinto de la población a partir de la cual se fundó, debido a que los pocos individuos utilizados para crear el stock no eran suficientemente representativos de la diversidad genética total de la población.
Finalmente, todos los trabajos, realizados a lo largo de muchos años, nos permiten establecer algunas consideraciones para la gestión y conservación de la trucha común. En primer lugar, la recuperación de la conectividad de los ríos es una actuación prioritaria para la recuperación de especies piscícolas como la trucha, y aquí, los datos genéticos nos pueden ser útiles para determinar el grado de franqueabilidad real de las barreras para decidir así acciones prioritarias. En segundo lugar, las herramientas genéticas son también muy importantes para monitorizar los programas de conservación ex-situ. La genética nos muestra que la repoblación con stocks nativos no está exenta de posibles consecuencias negativas, si los stocks se originan con un número inadecuado de ejemplares y no se renuevan a menudo. Los estudios de parentesco con microsatélites pueden utilizarse para monitorear la cría en cautividad e intentar evitar la consanguinidad en el stock. El monitoreo genético nos permitiría controlar qué ejemplares se reproducen e incluso seleccionar para la cría aquellos reproductores que retienen más diversidad, como se ha hecho en programas de recuperación de otras especies. Además, la alta estructuración poblacional de la trucha en los ríos, donde encontramos que cada río puede tener una población de trucha genéticamente particular, complica la repoblación con stocks nativos, y debe tenerse también en cuenta en el momento de diseñar el número de stocks necesarios para conservar las poblaciones de un sistema hidrográfico.


Parque Nacional de la Sierra de Guadarrama Creative Commons | GDPR | Cookies | Intranet
